논문 스터디
RNA interference (RNAi)
: 유전자 발현을 막는 기전
: siRNA(small interference)/miRNA
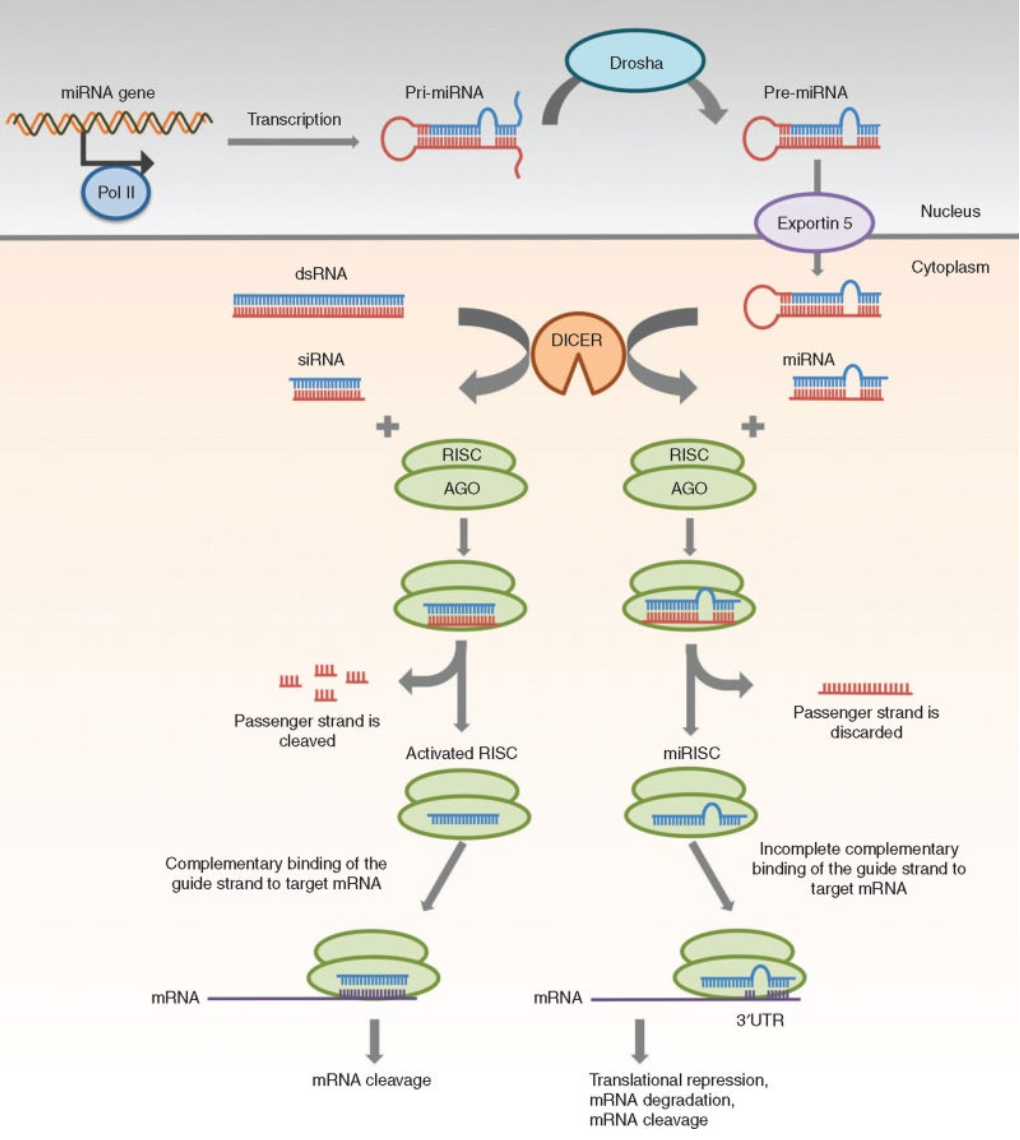
-RNAi: 상동 dsRNA과의 상호작용으로 인한 mRNA의 파괴 & mRNA의 비번역 구간에 miRNA의 불완전한 상보결합
-
RISC는 miRNA와 siRNA를 포함하고 있는 RNA-단백질 복합체이다
-
miRNA와 siRNA는 dsRNA가 만든 이중가닥 RNA 조각들
-
dsRNA가 외부에서 유래하면 siRNA라 하고, 세포가 직접 만들어냈다면 miRNA라고 한다
-
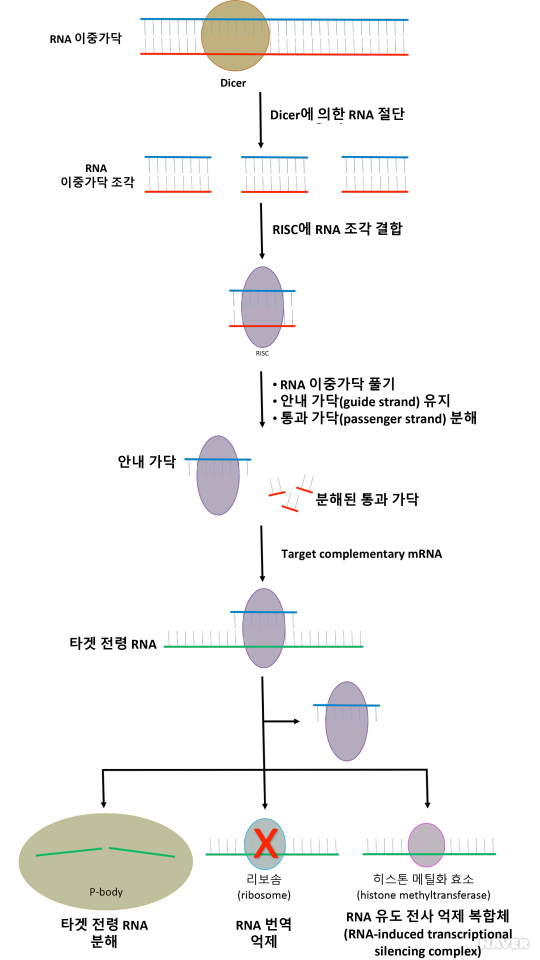
RISC는 복합체 내에 있는 miRNA나 siRNA 단일 가닥과 상보적 염기서열을 가진 반대편 가닥의 전령 RNA를 자른다
-
RISC에 의해 일어나는 mRNA의 절단 또는 불활성화 현상을 RNA간섭이라고 부르며, 세포는 이 과정을 이용해 전사의 변화 없이 특정 유전자의 발현을 억제할 수 있게 된다
-
RISC이 헬리케이스 영역은 이러한 이중체의 한쪽 끝에 결합해 ATP를 사용해 이중가닥을 푼다
-
antisense 가닥은 염기서열 특이적 유전자 발현 억제의 주형으로 쓰이기 때문에 Guide가닥(파란색)이라고 하고, sense 가닥은 Passenger가닥(빨간색)이라고 한다.
-siRNA의 Guide 가닥만 RISC에 도입되어 RNA-단백질 복합체인 siRISC를 형성한다. 이렇게 형성된 siRISC는 mRNA와 결합 및 절단함으로써 대상 유전자의 발현을 억제한다. 대상 mRNA의 절단부위 주변과 Guide 가닥이 완전 상보결합일 경우 대상 mRNA는 절단되고 파괴된다
-
miRNA는 세포핵에서 만들어진다. RNA polymerase2에 의해 전사된 miRNA를 Pri-miRNA라고 한다 Pri-miRNA는 Drosha 복합체에 의해 잘려 Pre-miRNA(hairpin RNA)로 잘린다. Dicer는 Pre-miRNA를 잘라내어 miRNA로 만들어내고 이 miRNA의 Guide 가닥은 RISC와 결합하여 유전자 발현을 억제한다. miRISC는 불완전 상보결합을 통해 대상 mRNA를 인식하며, 불완전 상보결합을 통해 대상 mRNA는 번역이 억제된다
-
RNAi가 mRNA를 분해하는지 또는 번역을 억제하는지는 mRNA 상보의 정도와 작용 부위에 따라 결정된다. 완전히 상보적인 miRNA는 mRNA의 분해를 유도할 수 있으며, 불완전 상보결합을 하는 siRNA는 mRNA 번역을 억제한다
- antisense인 siRNA를 가진 RISC는 mRNA와 상보적 염기쌍을 이루어 mRNA를 잘라낸다 -> mRNA의 특정 부분 유전자 발현X
- antisense siRNA는 재사용될 수 있음
<포유류 세포>
dsRNA는 단백질 kinase R(PKR)과 올리고아데닐레이트 합성효소를 활성화하여 인터페론 경로를 촉발함 -> 번역 개시 인자 elF2a(알파)의 PKR 매개 인산화와 리보뉴클레아제 L의 활성화 -> 번역의 전반적ㅇ니 하향 조절과 RNA 분해를 유도
kinase R(PKR): 바이러스로 감염으로부터 보호함 / PKR은 바이러스 감염에 의해 세포에 도입된 dsRNA에 의해 활성화됨 / PKR은 활성화되면 진핵 생물의 번역 개시 인자 eIF2α를 인산화할 수 있다. 이는 세포의 mRNA 번역을 억제해 바이러스 단백질의 합성을 막는다.
eIR2: 진핵 생물의 번역 개시 인자로, 알파, 베타, 감마라는 서브유닛으로 구성된 이종 삼중체이다
ribonuclease L: 활성화되면 세포 내의 모든 RNA를 파괴하고 mRNA 수출을 억제하는 효소
shRNA:
-
Design of siRNA
siRNA는 일반적으로 표적 mRNA와 완전히 상보적으로 작용하도록 설계된다. 초기에, 표적 mRNA의 서열은 주로 G,C의 함량과 표적 mRNA의 영역과 같은 경험적인 가이드라인에 따라 선택되었다. 이를 통해, 전체 siRNA의 약 1/4를 사용해 효율적인 유전자 침묵을 달성할 수 있었다. 최근에는 보다 실용적인 규칙이 개발되고 있다. miRNA와 효과적인 siRNA는 antisense 가닥의 5'말단의 안정성이 떨어지고, siRNA의 5' 말단에 도입된 염기쌍 불일치가 있다는 것이다. siRNA를 체계적으로 분석하여 siRNA 표적 서열 선택하는 알고리즘이 개발되었다. 소수의 알고리즘은 표적 mRNA의 2차 구조와 접근성을 고려한다. 대부분의 siRNA 선택 알고리즘은 유전체 전체 수준에서 의도치 않게 표적이 될 수 있는 다른 모든 mRNA 전사체와의 유사성을 검사하는 다양한 프로그램과 결합되어 있다. 이러한 알고리즘들을 기능 siRNA의 서열을 예측하는데 상당히 우수하지만 실험을 통해서만 가장 효율적인 서열을 식별할 수 있기에 향후 연구에서는 효과적인 siRNA의 구조를 정의하는 연구가 계속 진행될 것이다. -
siRNA delivery
siRNA를 성공적으로 디자인했다면 이제는 효율적인 전달이 이루어져야 한다. 화학적으로 합성된 siRNA와 shRNA는 생체 내에서 표적 유전자를 침묵시키기 위해 국소적 또는 체계적으로 전달될 수 있다.
(shRNA는 짧은 헤어핀구조로 바이러스 또는 비바이러스 벡터를 발현한다.)
4.1 Non-viral delivery
동물모델에서는 변형되지 않은 siRNA이나, 화학적으로 안정화되거나 변형된 siRNA를 주입해보거나, 리포솜이나 나노입자에 넣어 siRNA를 캡슐화시키거나 양이온성 또는 다른 특정 운반체에 siRNA를 결합시키는 등 여러 도전들이 시도되었다. 변형되지 않은 siRNA는 생체 내에서 반감기가 매우 짧다(몇 초에서 몇 분). siRNA를 화학적으로 변형하면 RNAse 분해에 내성을 갖게 되고 반감기가 연장된다. 여러가지 화학적 변형이 제안되었고 어느 정도 성공했지만, 이러한 전달 방법은 원치 않는 부위로 전달되거나 변형에 의한 siRNA 침묵 활동의 억제 등을 포함한 몇 가지 단점이 있었다. 보다 특정한 조직의 친화성을 부여하기 위해 siRNA를 항체조각이나 세포 표면 수용체에 대한 리간드에 공유 또는 비공유로 결합시켜 특정 수용체를 지닌 세포로 siRNA가 전달될 수 있도록 제한할 수 있다. 여러 특성과 방식을 결합해 생체 내 세포 유형별 siRNA 전달을 성공적으로 할 수 있게 되었다.
최근에는 비병원성(nonpathogenic) 박테리아가 RNAi를 유도하는데 사용되었다. 기능적 shRNA가 박테리아 침입을 통해 포유류 세포 집단 거의 전체에 직접 전달되어 RNAi를 유발할 수 있음이 발견되었는데, 이를 이용해 Xiang은 체외 및 생체 내에서의 RNAi에 효과적인 transkingdom RNA interference라는 기술을 개발하였다, 이는 박테리아 매개 RNA가 기능 유전체학 연구와 치료제 설계를 위한 유망한 연구 분야가 될 수 있음을 시사한다.
4.2 Viral delivery
아데노 바이러스, 레트로 바이러스, 렌티 바이러스에서 유래한 벡터들은 RNA 전달에 사용되었었다. 아데노바이러스 벡터를 사용한 생체 내 RNAi의 성공적인 전달이 보고된 바도 있다. 아데노바이러스에서 유전 정보는 표적 세포 핵 외부로 전파되며 바이러스 DNA가 숙주 세포 게놈에 통합될 위험이 거의 없으며 벡터로서 선호되고 있다. 하지만 조직영향력이 부족하고 용량이 간독성을 제한한다는 단점을 가지고 있다.
레트로바이러스는 유전체에 통합되어 shRNA를 안정적으로 발현할 수 있으며 시험관 내 RNAi에 성공적으로 적용되었다. 그러나 생체 내 사용의 경우 레트로바이러스 벡터는 활발하게 분열하는 세포에서만 효과적이며 게놈 통합은 삽입성 돌연변이 유발 및 잠재적 발암의 위험을 수반한다.
렌티바이러스는 생체 내에서 표적 유전자를 침묵시키는 데 성공적으로 사용되었다. 렌티바이러스의 장점은 분열하는 세포와 분열하지 않는 세포를 효율적으로 전이시킬 수 있고, 삽입 돌연변이 유발 위험이 없으며, 면역원성이 낮다는 점이다. 또한, 아데노바이러스 벡터보다 면역원성이 낮다. 아데노바이러스 또는 특정 조직 영양성을 가진 렌티바이러스의 개발은 바이러스 벡터의 생체 내 RNAi 전달에 대한 유용성을 높일 수 있다.
- RNAi as a potential therapeutic for immune diseases
이러한 RNAi 기술을 이용해 면역계 질환 치료에 이용하고 있다.
면역 세포 표면에 발현되는 분자(CD, 사이토카인 및 케모카인 수용체, 접착 분자), 사이토카인 및 케모카인, 세포 내 신호 전달 단백질은 세포 성숙, 증식 및 활성화에 중요한 역할을 하는 분자들로 치료용 RNAi의 잠재적 표적 대상이다.
5.1. RNAi targeting cell surface receptors (세포 표면 수용체)
-
TGF-β(형질 전환 성장 인자-베타)
- 상처 치유 과정의 중요한 매개체(레이저 수술, 녹내장 수술_안구)
-> TGF-β 수용체 siRNA는 수용체 전사 및 단백질 발현을 억제하여 염증 반응과 매트릭스 침착을 감소시킨다. 이를 이용해, TGF-βRII를 표적으로 하는 siRNA를 눈에 직접 적용해 안구 염증과 흉터를 예방한다.
- 세포 외 기질 축적의 주요 매개체 (간질 성 섬유증)
-> TGF-β RII siRNA 발현 벡터를 주입하여 TGF-β RII를 녹다운하면 신장의 콜라겐 함량과 신장 피질의 섬유화 영역 크기가 크게 감소한다.
- 상처 치유 과정의 중요한 매개체(레이저 수술, 녹내장 수술_안구)
-
GPCR(G단백질 결합 수용체)
: 많은 중요한 생리학적 과정에 관여하기에 현재 사용 가능한 약물의 50% 이상의 표적이 되고 있음- 포밀 펩타이드 수용체(FPR)에 대한 RNAi
-> FPR의 활성화는 박테리아 감염 및 염증에 대한 숙주 방어에 중요한 역할을 함 (FPR 활성화로 인한 부작용 발생)
-> FPR mRNA의 뉴클레오타이드를 표적으로 하는 레트로바이러스 기반 벡터를 제작 -> FPR에 감염된 쥐 세포에 FPR-siRNA 주입 -> FPR-mRNA 및 단백질의 발현이 현저히 감소함 -> 누드 마우스에서 종양 세포의 종양원성 감소
-> 합성 FPR-siRNA를 인간 대식세포로 직접 전달 -> FPR의 발현 억제, 세포화학 주성 및 과산화물 음이온 방출 억제 -> 인간 악성 교모세포종 세포주에서 FPR의 발현과 기능 폐지 - chemokine receptor CXCR4에 대한 RNAi
-> 케모카인 수용체 CXCR4와 그 유사 리간드 CXCL12(SDF-1)는 유방암 세포의 먼 장기로의 이동과 침입을 조절함. CXCR4는 종양 전이 개입을 위한 중요한 표적이 됨.
-> 첫번째 성공: 시험관 내에서 암세포 침입을 억제하는 유도성 siRNA로 유방암 세포에서 CXCR4를 하향 조절 -> 마우스 모델에서 CXCR4의 침묵이 유방 종양 세포의 성장과 전이를 억제
- 포밀 펩타이드 수용체(FPR)에 대한 RNAi
-
HIV-1 질병 치료
: HIV-1은 세포 표면 CD4에 처음 결합한 후 CXCR4 및 CCR5와 상호 작용하여 인간 세포에 침투한다. RNAi를 이용해 CD4 또는 코어수용체를 코딩하는 유전자를 녹다운시켜 HIV 진입과 복제를 차단하고자 함.- siRNA의 치료 표적 CD4
: 바이러스의 진입 억제, 재감염 감소를 보여주었지만 면역체계의 정상적인 기능 역시 방해할 수 있다.
- siRNA의 치료 표적 CCR5 및 CXCR4와 같은 HIV-1 코어수용체
: HIV-1 핵심 수용체를 발현하는 U87-CD4+ 세포에서 siRNA로 CXCR4와 CCR5를 63% 및 48% 차단 -> X4 또는 R5 HIV-1 균주에 의한 세포의 급성 감염을 효과적으로 감소됨
: CXCR4 mRNA를 표적으로 하는 siRNA의 감염은 또한 X4-열대성 HIV-1 감염 시 세포 간 융합을 억제됨
: 렌티바이러스 기반 벡터를 통해 인간 말초혈액 T 림프구에 CCR5에 대한 siRNA를 도입한 결과, 2주 동안 CCR5 발현이 현저하게 억제되어 R5 열대성 HIV-1 감염으로부터 T 림프구를 보호됨
: H1 프로모터에 의해 CCR5 siRNA를 발현하는 이중 특이적 렌티바이러스 벡터와 U6 프로모터에 의해 CXCR4를 발현하는 렌티바이러스 벡터는 T세포 트로픽(X4) 및 단핵구 트로픽(R5) HIV-1의 감염으로부터 세포를 보호함
- siRNA의 치료 표적 CD4
5.2. RNAi targeting intracellular signaling molecules (세포 내 신호 분자)
핵 인자-κB(NF-κB), STAT, 사이토카인 신호 전달 억제 1(SOCS1)은 면역계의 정상적인 기능을 유지하는 중요한 세포 내 신호 분자
NF-κB: 염증 반응 중에 수많은 유전자의 발현을 조절한다.TNF-α로 유도된 염증 모델에서 NF-κB의 p65 서브유닛에 대한 siRNA의 발현은 인간 기관지 상피 세포의 IL-6 및 IL-8 분비를 유의하게 억제하여, NF-κB에 대한 siRNA가 세포 반응의 심각성을 조절하는 데 사용될 수 있음을 시사합니다. 많은 연구에서 류마티스 질환, 특히 염증, 연골 분해, 세포 증식, 혈관 신생 및 판누스 형성을 촉진하는 데 필수적인 역할을 하는 골관절염(OA) 및 류마티스 관절염(RA)의 발병 기전에 대한 NF-κB 신호 성분의 기여도를 조사했습니다. NFκB를 표적으로 하는 안티센스 DNA와 RNAi를 사용하려는 시도가 동물 모델에서 OA와 PA 치료에 고무적인 결과를 낳았습니다.
SOCS1은 수지상 세포(DC) 기능을 조절하고 야누스 키나제(JAK)를 억제하여 염증성 및 자가 면역 질환을 억제합니다. T세포를 자극하는 DC의 능력과 적응 면역의 크기는 DC의 SOCS1에 의해 결정된다는 것이 밝혀졌습니다. 이를 뒷받침하는 증거로 SOCS1을 침묵시키면 DC가 매개하는 항원 특이적 항종양 면역이 강력하게 향상됩니다. 생쥐에서 SOCS1이 침묵된 DC는 HIV-1 외피(Env) 특이적 CD8+ 세포독성 T 림프구 및 CD4+ T 헬퍼 세포의 활성과 항체 반응을 향상시켰습니다. 또한 SOCS1이 침묵된 DC는 HIV Env 매개 억제에 대한 내성이 더 강했으며 HIV Env 특이 기억 항체 및 T 세포 반응을 유도할 수 있었습니다. 또한, HIV DNA 백신의 효능과 효능은 SOCS1 siRNA 발현자 DNA와의 공면역에 의해 크게 향상됩니다. 따라서 '항원 발현 억제제'를 억제하는 RNA 전략은 종양과 병원체에 대한 치료 또는 예방 백신을 강화하는 데 실용적인 것으로 보입니다.
신호 전달 및 전사 활성화(STAT) 계열의 일원인 STAT3는 사이토카인과 펩타이드 성장 인자에 의한 신호 전달의 핵심 매개체입니다. 지속적으로 활성화된 STAT3는 종양 세포의 증식을 촉진하고 세포 사멸로부터 보호함으로써 전립선암의 발생과 진행에 중요한 역할을 합니다. 특정 siRNA에 의해 STAT3를 차단하면 인간 전립선암 세포의 성장이 억제되고 세포 사멸이 유도됩니다. STAT3 siRNA는 전립선 암세포에서 안드로겐 조절 전립선 특이 항원, 항 세포 사멸 단백질 Bcl-2 및 성장 촉진제 사이클린D1 및 c-Myc의 발현을 억제합니다. 비인간 후두암 및 호지킨 림프종 세포주에서도 STAT3 siRNA는 후두암 세포와 호지킨 림프종 세포의 세포 증식을 감소시키고 세포 사멸을 유도합니다. 이러한 관찰 결과는 STAT3를 표적으로 삼는 것은 암 치료를 위한 새로운 악성 종양 치료를 위한 새로운 치료 전략이 될 수 있음을 보여줍니다. 새로운 치료 전략이 될 수 있음을 보여줍니다.
5.3. RNAi targeting cytokines and chemokines (사이토카인과 케모카인)
RNAi는 면역 반응 조절에서 여러 사이토카인과 케모카인의 역할을 연구하는 데 사용되었으며, 더 중요한 것은 사이토카인의 부작용에 대한 새로운 치료법을 개발할 수 있는 가능성을 연구하는 데 사용되었습니다.
5.3.1. Interleukin-12 (IL-12)
IL-12는 두 개의 이황화물 연결 서브유닛 p35와 p40으로 구성된 이합체 사이토카인입니다. 단핵구, 대식세포, DC, 호중구, 그리고 그보다 적은 범위의 B 세포에서 생성됩니다. IL-12는 인터페론-γ(IFN-γ)의 생성을 유도하고 T 헬퍼 1(Th1) 세포의 분화를 촉진하며 선천성 면역 반응과 적응성 면역 반응 사이의 연결고리 역할을 합니다. 그러나 IL-12의 과잉 생산은 염증 반응에서 돌이킬 수 없는 장기 손상을 일으킬 수 있습니다. IL-12 p35에 대한 siRNA는 IL-10 생산을 증가시키는 것으로 밝혀져 DC가 시험관 내에서 동종 T 세포로부터 Th2 사이토카인의 생산을 자극하는 능력을 부여했습니다. 또한, siRNA에 의해 IL-12 생성을 위해 침묵된 DC는 MLR에서 낮은 동종 자극제가 되었습니다. IL-12가 침묵된 DC와 KLH 펄스 DC는 항원 특이적인 방식으로 Th2 사이토카인 프로파일로 면역 반응을 양극화했으며, 이는 IL-12에 대한 RNAi가 DC 매개 면역 반응을 조절하는 강력하고 구체적인 접근법임을 시사합니다. 추가 연구에 따르면 쥐 대식세포 유사 세포주 J774A.1에 IL-12 p40 siRNA를 감염시키면 다음과 같은 결과가 나타났습니다.
IL-12 발현이 감소하고 LPS/IFN-γ에 의한 세포 활성화가 감소했습니다. IL-12 p40을 표적으로 하는 siRNA를 쥐 복강에 전달하면 LPS에 의한 염증이 감소하여 미생물 생성물로 인한 염증을 회피하기 위해 IL-12p40을 표적으로 하는 siRNA를 사용할 수 있는 가능성이 있음을 나타냅니다.
5.3.2. IL-10
IL-10은 여러 면역 반응을 억제하는 중요한 제2형 사이토카인입니다. 면역계에 대한 IL-10의 활동은 주로 DC의 성숙을 억제함으로써 매개됩니다. IL-10 특이적 siRNA를 DC에 주입하면 성숙 후 CD40 발현과 IL-12 생산이 증가했습니다. 이러한 DC는 는 동종 T 세포 증식을 향상시키는 더 강력한 능력을 나타냅니다. IL-10 siRNA를 이식한 DC는 또한 IFN-γ를 증가시켜 Th1 반응을 향상시키고 IL-4 생산을 감소시킵니다.
5.3.3. Tumor necrosis factor-α (TNF-α)
TNF-α는 염증 및 면역 반응에서 가장 잘 알려진 사이토카인입니다. siRNA로 TNF-α를 차단하는 것은 염증 및 자가면역 질환에서 가장 유망한 치료법 중 하나로 부상하고 있습니다. 치사량의 리포다당류(LPS)를 주입한 쥐의 패혈증 발생은 TNF-α를 표적으로 하는 siRNA로 동물을 전처리함으로써 현저히 억제되었습니다. 콜라겐 유발 관절염이 있는 마우스에서 TNFα를 표적으로 하는 siRNA를 관절 조직에 전기 천공하거나 리포좀 운반체를 사용하여 TNFα siRNA를 전신적으로 전달하면 관절 염증이 현저히 억제되었습니다.
5.3.4. TGF-β
TGF-β는 염증과 면역 반응에 대한 전분화 작용 외에도 악성 신경교종 환자의 면역 기능 장애에 관여하는 핵심 분자입니다. 흥미롭게도 TGF-β1과 2를 표적으로 하는 RNAi는 신경교종 세포의 표현형을 변화시켜 시험관 내에서 이동성이 감소하고 누드 마우스에서 종양원성을 잃는 등 면역 세포 용해에 더 민감한 신경교종 세포의 표현형을 변화시킵니다. TGF-β1은 또한 사구체 신염을 포함한 다양한 질병의 섬유화 단계에서 중요한 역할을 합니다. 이러한 맥락에서 TGF-β1을 표적으로 하는 RNAi는 실험용 사구체신염에서 매트릭스 확장의 진행을 현저히 개선했습니다. 지금까지 TGF-β1을 표적으로 하는 벡터 기반 RNAi는 TGF-β1 발현을 억제하는 능력을 보여주었습니다. 생체 내 및 생체 외에서 사용 가능성을 시사합니다. 섬유성 질환의 예방 및 치료를위한 siRNA 질환의 예방 및 치료에 siRNA를 사용할 수 있는 가능성을 시사합니다.
5.3.5. Chemokines
이차 감염에 노출된 외상 환자의 폐 손상 병리에는 폐에서 활성화된 다형 핵 호중구(PMN)의 격리에서 볼 수 있듯이 면역 기능 조절 장애가 수반됩니다. 각질세포 유래 케모카인(KC)과 대식세포 염증성 단백질-2(MIP-2)는 쥐의 PMN 케모카인이며 급성 폐 손상(ALI)의 발병 기전에서 중요하지만 잠재적으로 서로 다른 역할을 합니다. ALI 마우스 모델에서 출혈 후 2시간 후와 패혈성 챌린지 24시간 전에 KC 또는 MIP-2에 대한 siRNA를 기관 내로 투여했습니다. MIP-2 siRNA는 조직 및 혈장 IL-6, 조직 MIP2, 폐의 PMN 유입을 유의하게 감소시켰습니다. 대조적으로, KC siRNA 처리는 혈장 KC, 조직 KC 및 IL-6를 감소시켰지만 혈장 IL-6 및 호중구 유입은 유의하게 감소시키지 않았습니다. 이러한 결과는 국소 MIP-2의 폐 생산, 더 큰 범위로 KC는 PMN 관련 발병 기전에 기여합니다. 출혈 후 ALI의 병인에 기여하며, 그 mRNA는 아마도 치료적 개입을 위한 그럴듯한 표적일 가능성이 높습니다.
요약하면, RNAi는 면역 체계에서 광범위한 잠재적 질병 표적을 가진 흥미롭고 새로운 치료 도구입니다(표 1). 그러나 이러한 분자의 대부분은 면역계와 비면역계 모두에서 중요한 생리적 기능을 가지고 있습니다. 안구 염증 및 섬유증에 관여하는 TGF-βRII, 관절 염증에 관여하는 NF-κB
및 관절 염증의 TNF-α와 같은 일부 분자에 대해서는 이에 대한 siRNA 또는 shRNA 발현 플라스미드 분자는 향후 치료제로 개발될 가능성이 있습니다. 치료제로 개발될 가능성이 있습니다. CCR5에 대한 RNAi 이펙터의 전신 전달은 다음에도 실용적일 수 있습니다. HIV 감염 치료. 그러나 전달의 효율성 생체 내에서 이러한 분자에 대한 RNAi의 전달 효율은 추가 조사를 통해 개선되어야 합니다. 다른 잠재적 면역 체계의 다른 잠재적 표적 분자에 대해서는 세포 또는 장기 특이적 RNAi는 향후 치료제 개발을 위한 향후 치료제 개발을 위한 연구 방향입니다.
- Perspectives
RNAi는 높은 수준의 특이성에 의존하지만, 최근 연구 결과에 따르면 표적을 벗어난 효과 및 기타 잠재적인 합병증이 발생할 수 있습니다. miRNA 활성에서 볼 수 있듯이, siRNA의 하위 집합은 비표적 유전자 발현의 번역 후 억제를 유도할 수 있습니다. 이러한 비특이적 억제 효과는 siRNA의 농도가 낮고 억제된 유전자에 부분적으로 상보성을 가질 때 발생합니다. siRNA와 표적 간의 단일 불일치는 비특이적 억제 효율을 감소시키지만, 동일한 siRNA는 부분 상보성 영역을 포함하는 비표적 유전자의 발현을 여전히 하향 조절할 수 있습니다. siRNA의 다른 비특이적 효과도 관찰되었습니다. 예를 들어, siRNA는 대체 dsRNA 반응 세포 경로를 활성화하여 인터페론(IFN) 자극 유전자(ISG)를 포함하여 일반적으로 선천성 면역 반응 경로와 관련된 많은 유전자의 상향 조절을 유도할 수 있습니다. 또한 siRNA는 TLR3(톨 유사 수용체 3) 및/또는 PKR을 활성화하여 1차(인터페론 β 및 p56에 예시된 것처럼) 및 2차(단백질 합성 의존성 ISG) 랜스크립션 이벤트를 모두 유도할 수 있습니다.
또한 TLR7과 TLR8은 특정 서열을 가진 siRNA를 인식하여 IFN 반응을 유도할 수 있습니다. RNAi가 비특이적 효과를 유발하는 빈도와 이러한 효과를 유발할 수 있는 siRNA 또는 shRNA의 서열 또는 구조적 특성을 조사하기 위해서는 추가 연구가 필요합니다. IFN 유도 또는 TLR 활성화를 줄이기 위한 잠재적 전략에는 siRNA 설계를 위한 새로운 알고리즘 개발과 siRNA의 화학적 변형이 포함됩니다. siRNA에 대한 다른 안전성 우려 사항으로는 삽입 돌연변이 유발 및 악성 형질 전환을 유도할 수 있는 가능성과 바이러스 벡터에서 발현된 단백질에 대해 숙주가 면역 반응을 일으킬 수 있는 가능성이 있습니다. 실험적 RNAi는 내인성 miRNA 매개 유전자 조절에 필요한 것과 동일한 세포 메커니즘을 사용하기 때문에 두 프로세스가 서로 간섭하여 바람직하지 않은 유전자 변조를 일으킬 수 있습니다.
종합적으로 볼 때, 인간 질병의 미래 치료제로서 siRNA를 사용하려면 인간 질병에 사용하기 위해서는 더 엄격한 조사가 필요합니다. 효능과 선택성을 지배하는 규칙에 대한 더 엄격한 조사가 필요합니다, 부작용을 피하기 위한 전략 개발, 그리고 전달 시스템의 개선이 필요합니다.
Translated with www.DeepL.com/Translator (free version)